
Molecular Cell:线粒体NADPH介导氧化还原‑脯氨酸轴,驱动胶质瘤增殖
烟酰胺核苷酸转氢酶将氧化还原稳态与人脑胶质瘤中的脯氨酸生物合成直接偶联
2026年8月,英国伯明翰大学等单位的相关研究人员在《Molecular Cell》(IF:16.0)上发表了题为“Nicotinamide nucleotide transhydrogenase directly couples redox homeostasis to proline biosynthesis in human glioma”的研究论文,揭示了脯氨酸积累作为线粒体 NAD(P)(H) 稳态的标志物,以及将烟酰胺核苷酸转氢酶(NNT)确立为针对缺氧及营养受限的人类肿瘤中多通路代谢紊乱的潜在治疗靶点。

亮点概述:
-
脯氨酸在缺氧性胶质瘤体内环境中积累,且其在脑组织中通过生物合成途径生成。
-
缺氧性胶质瘤细胞中线粒体NADH库存在空间区室化分布。
-
NNT依赖性转氢化反应为脯氨酸生物合成提供线粒体NADPH。
-
缺失NNT会显著抑制胶质瘤细胞在体外及体内的生长。
研究背景:
中枢神经系统(CNS)由于血脑屏障对营养物质通透性的限制以及固有的氧气限制,形成了一个独特且受限的肿瘤微环境。这可能会增加其对致死性代谢抑制的易感性。缺氧状态会导致吡啶辅因子烟酰胺腺嘌呤二核苷酸(H)(NADH)中代谢分解产生的电子积累(即NADH/NAD+比值升高),从而需要替代的还原库来维持通量平衡。先前研究结果表明,在包括缺氧在内的一系列细胞应激因素作用下,NADH/NAD+比值升高会引发脯氨酸生物合成的增加。从生化角度来看,在这些情况下合成脯氨酸可能是有利的,因为它是所有非必需氨基酸中还原度最高的,且对细胞无毒性。
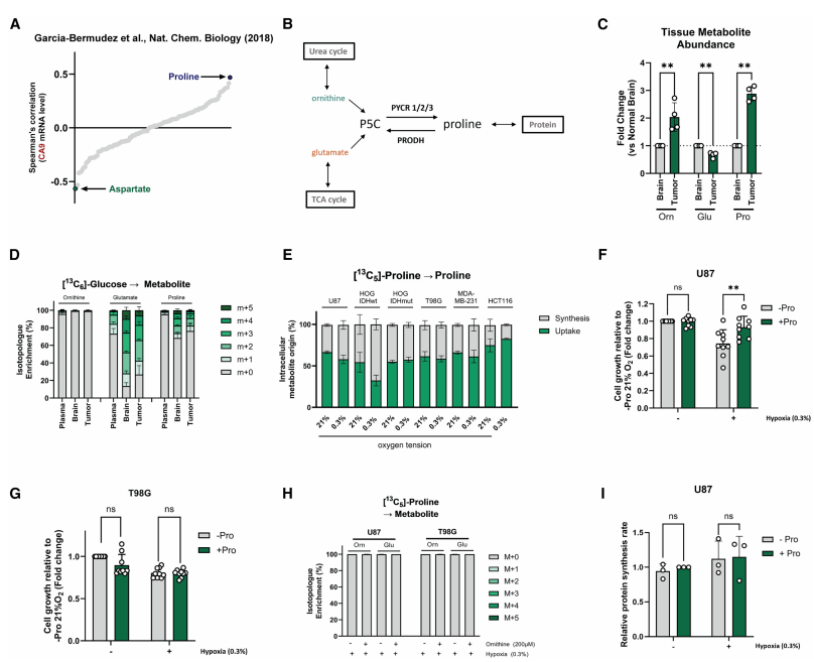
研究人员基于24例人胶质母细胞瘤样本数据集分析缺氧条件下mRNA特征与代谢物丰度的相关性,发现脯氨酸是胶质瘤缺氧相关性前五的核心代谢指标。随后利用人类胶质母细胞瘤(MGG8-GFP)原位异种移植模型,探索体内肿瘤脯氨酸的生物合成。向携带异种移植瘤的小鼠持续输注[13C6]-葡萄糖(CNS代谢物的主要碳源)6小时,结果显示无论在正常脑组织还是肿瘤区域,葡萄糖衍生的碳都是谷氨酸库的主要来源。
研究结果:
鉴于脯氨酸从血液向CNS的穿透效率较低,且各尿素循环中间产物在CNS中的来源尚未在体内得到完全阐明,研究人员对一系列胶质瘤细胞系(U87、HOG ± IDHR132H及T98G)以及其他高转移性细胞系(结直肠癌HCT116;乳腺癌MDA-MB-231)中的脯氨酸来源进行探究。通过在培养基中添加鸟氨酸和不同浓度外源脯氨酸,在常氧和缺氧条件下对多种细胞系进行体外实验,以及通过同位素示踪实验定量区分外源摄取与内源合成对胞内脯氨酸库的贡献,结果表明肿瘤细胞内源脯氨酸合成通路在各细胞系、不同氧条件下均高度保守。接着探究了脯氨酸是否会影响胶质瘤细胞的增殖。在标准培养氧浓度条件下,大多数细胞系不受细胞外脯氨酸水平的影响,而在缺氧条件下,细胞反应呈现异质性,在四种胶质瘤细胞系中,U87和HOG + IDHR132H这两种细胞系表现出对脯氨酸敏感的生长特性。再通过进一步机制探究显示,对脯氨酸敏感的U87细胞和对脯氨酸不敏感的T98G细胞均未发生脯氨酸氧化。
胶质瘤在体外及体内均能合成脯氨酸
研究人员选用了U87细胞和T98G细胞,通过稳定同位素标记代谢物示踪技术探究了脯氨酸生物合成中鸟氨酸转氨酶(OAT)途径与吡咯啉-5-羧酸合成酶(P5CS)途径的相对利用情况。对[13C6]-葡萄糖示踪结果的广泛分析表明,U87细胞对缺氧的代谢适应也不完全,表现为无法抑制由葡萄糖衍生的丙酮酸氧化以生成柠檬酸,以及嘌呤和嘧啶的代谢周转显著受损。基于[13C5]-谷氨酰胺示踪发现,U87细胞在三羧酸(TCA)还原代谢存在缺陷且不依赖脯氨酸,而T98G细胞可同时激活TCA氧化与还原途径,用于天冬氨酸及嘧啶的生物合成。为排除天冬氨酸‑精氨酸琥珀酸分流对鸟氨酸及天冬氨酸代谢的干扰,研究人员通过[13C5]-鸟氨酸示踪发现鸟氨酸转氨甲酰酶(OTC)活性缺失,而[1,2,3,4,5-13C5]-瓜氨酸补充实验表明,U87细胞具有一定的精氨酸琥珀酸合成酶1(ASS1)活性,但缺乏精氨酸琥珀酸裂解酶(ASL)活性。

脯氨酸敏感性与机体对缺氧环境的代谢适应能力受损相关
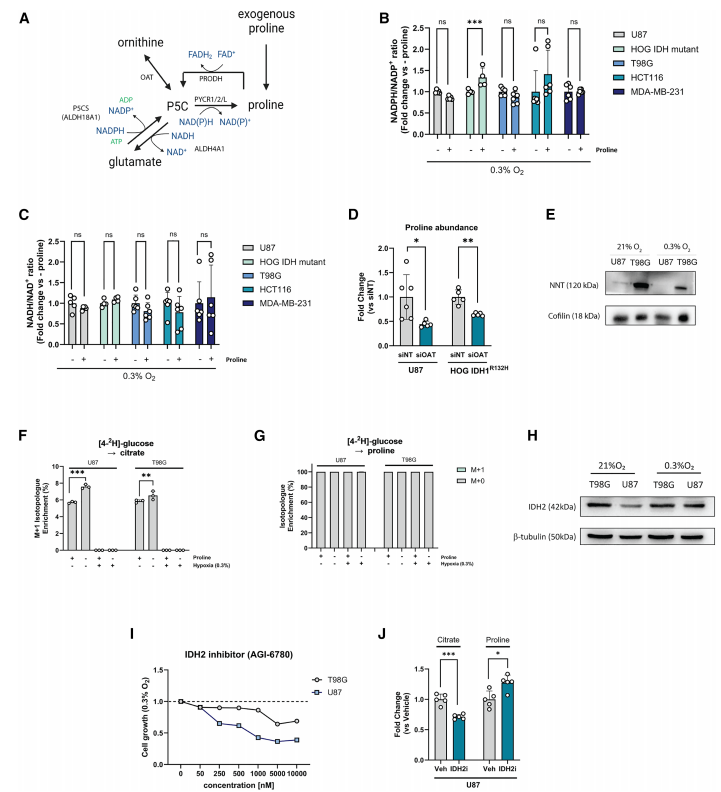
已有研究发现,补充鸟氨酸能够回补脯氨酸水平,这提示存在一条不消耗线粒体NADPH的鸟氨酸依赖性脯氨酸合成通路。为明确本研究中鸟氨酸利用差异的生物学功能,研究人员利用siRNA在脯氨酸敏感细胞系中敲除OAT。在缺乏脯氨酸的培养基中,这会增加P5CS的利用以提供脯氨酸合成所需的吡咯啉-5羧酸(P5C),从而增加对线粒体NADPH的需求。敲除OAT并未降低全细胞NAD(P)H/NAD(P)+比值,但降低细胞内脯氨酸水平,这表明存在对有限线粒体NADPH库的竞争。除此之外研究人员还注意到线粒体中含有一种名为烟酰胺核苷酸转氢酶(NNT)的酶(通过NADH转氢作用将NADP+转化为NADPH),通过实验发现与U87细胞相比,T98G细胞中的NNT表达量显著更高。
为直接测定在缺氧条件下通过NNT途径从NADH向线粒体NADPH发生的氧化还原氢化物转移过程,研究人员采用了[4-²H₁]-葡萄糖,它可通过糖酵解对细胞质NADH进行强效标记,并能通过苹果酸-天冬氨酸穿梭(MAS)将其氧化还原氢转移到线粒体。结果观察到在常氧条件下柠檬酸含量增加,而在缺乏脯氨酸的培养基中,柠檬酸含量进一步升高但未向脯氨酸转移标记。相比之下,缺氧细胞中柠檬酸未出现同位素富集,这表明MAS缺乏NADH转运活性。最后,研究人员通过同位素示踪和siRNA基因沉默实验排除了其他已知线粒体NADPH生物合成途径的作用,苹果酸酶3(ME3)、谷氨酸脱氢酶(GDH/GLUD1)、异柠檬酸脱氢酶2(IDH2)以及赖氨酸代谢。综合来看,这些数据表明NNT依赖性转氢化可能是缺氧条件下线粒体NADPH生成的主要途径,进而促进了不同胶质瘤细胞系对缺氧条件的适应。
线粒体NADPH的可用性决定缺氧条件下脯氨酸的敏感性
NNT位于线粒体内膜,利用跨膜质子梯度将还原电位从NADH传递至NADP+。在缺氧条件下,U87细胞的线粒体膜电位升高,而T98G细胞降低,这可能反映NNT的基础活性。随后研究人员在NNT表达水平较高的T98G细胞系中敲除NNT(T98GshNNT),结果显示缺失NNT严重抑制细胞增殖,降低细胞内外脯氨酸的含量,并增加细胞内NADH/NAD+的比值。与线粒体NADPH水平降低一致,T98GshNNT细胞表现出还原性羧化作用(柠檬酸M+5)降低,其表型与U87WT细胞相似。同时构建了由巨细胞病毒(CMV)启动子驱动的NNT过表达细胞系(U87NNT),U87NNT细胞的增殖能力增强,还原性羧化作用增强,且细胞内外的脯氨酸含量均增加。
为了探索NNT在体内的生理意义,研究人员使用NCH421K人胶质瘤模型。在NCH421K原位异种移植模型中,缺失NNT导致生长速率降低超过50%。在人类患者中,发现在一例罕见的区域性切除标本中NNT表达在肿瘤区域内显著增强。最后,对广泛胶质瘤组织进行分析,并测定氧合(CA9-低)或缺氧(CA9-高)区域中以线粒体质量(TOMM20)为基准归一化的相对NNT表达水平,结果显示缺氧条件下的NNT表达显著增加,这与体外研究结果一致,后者突显NNT在缺氧条件下的功能重要性。

NNT维持线粒体NADPH库,对胶质瘤生长至关重要
综上所述,本研究揭示了脯氨酸在人源胶质母细胞瘤及小鼠原位胶质母细胞瘤异种移植模型中存在蓄积现象,且该现象与肿瘤内缺氧状态相关,并将NNT确立为针对缺氧及营养受限的人类肿瘤中多通路代谢紊乱的潜在治疗靶点。